Research Articles

REPRODUCTIVE COMPONENTS OF FICUS HISPIDA AND ITS POLLINATOR

  • PENG Yan-Qiong 1, 2 ,
  • YANG Da-Rong , 1, * ,
  • DUAN Zhu-Biao 1 ,
  • DENG Xiao-Bao 1
Expand
  • 1 Xishuangbanna Tropical Botanical Garden, Chinese Academy of sciences, Kunming 650223, China
  • 2 Graduate School of Chinese Academy of Sciences, Beijing 100039, China
* E-mail:

Received date: 2004-12-26

  Accepted date: 2005-04-15

  Online published: 2005-08-30

Abstract

The interaction between Ficus species and their pollinating wasps (Agaonidae) represents a striking example of mutualism. With few exceptions, seed production by fig trees is dependent on a unique fig-pollinating wasp, and the pollinator's offspring feed only on the ovules. We studied the reproductive components of Ficus hispida and its pollinator (Ceratosolen solmsi marchali) in the tropical area of Xishuangbanna. Ficus hispida is functionally dioecious, with male and female functions relegated to separate plants, called gall and seed figs. Gall figs are functionally male because they foster the pollinator larvae that disperse the fig's pollen as adults. Seed figs are functionally female and produce only seeds. When a syconium becomes receptive, pollinators will enter it and lay eggs or pollinate the female flowers inside the syconium cavity. The pollinators trapped inside the syconium cavity and in the ostiole were recorded in the wild. The results showed that mean foundress number was greater in female than in male syconia (females: 2.72±2.04; males: 2.08±1.65). About 52% of the foundresses could enter the cavity of the female syconia through the ostiole and only 35% for the male syconia. Many foundresses died in the ostiole and consequently failed to lay eggs and pollinate the female syconium. As there were fewer female flowers per syconium in male than in female syconia, and foundress numbers were greater in female than in male syconia, female syconia produced more seeds than male syconia produced pollinators, and the number of seeds (1 891.63 ± 471.53) was over five times of the number of pollinators (367.20 ± 208.02). In female syconia, there was a significant positive correlation between seeds and female flowers, while there was a significant negative correlation between the number of seeds and aborted female flowers. Male syconia produced pollen and wasps also reproduced inside the male syconia, but many factors influenced pollinator reproduction. Gall numbers showed the strongest impact on the pollinator population; the secondary factor was aborted galls, which could reduce the pollinator numbers by about 30%; the third factor was the total number of female flowers, which influenced the oviposition ratio of pollinators. Moreover, three species of non-pollinating wasps,Philotrypesis pilosa, Philotrypesis sp., and Apocrypta bakeri, oviposit from outside the syconium into ovaries containing pollinator eggs on the male tree. They co-existed with pollinators inside the male syconia. The non-pollinating wasps had a direct impact on the reproductive success of the pollinator wasp and were able to reduce the number of pollinator individuals per male syconium by 30. They also showed an indirect impact on the host figs.

Cite this article

PENG Yan-Qiong , YANG Da-Rong , DUAN Zhu-Biao , DENG Xiao-Bao . REPRODUCTIVE COMPONENTS OF FICUS HISPIDA AND ITS POLLINATOR[J]. Chinese Journal of Plant Ecology, 2005 , 29(5) : 793 -798 . DOI: 10.17521/cjpe.2005.0105

对叶榕 (Ficus hispida),雌雄异株,分布在云南、广东、海南、广西及贵州,国外分布在印度、泰国、马来西亚等地(张秀实等,1998)。关于对叶榕及其传粉榕小蜂繁殖特点的研究,国外只在印度开展过(Patel, 1996, 1998; Patel & Hossaert-Mckey, 2000),国内仅作者所在项目组在西双版纳地区进行研究报道 (Yang et al., 2002; 彭艳琼等,2002;Peng et al., 2005)。相似于其它的榕树,对叶榕只能依靠专一的传粉榕小蜂(Ceratosolen solmsi marchali)传粉才能进行有性繁殖,而传粉榕小蜂也只有在对叶榕果内的雌花子房中才能正常发育,完成生活史,两者在有性繁殖上互不可缺 (Herre, 1989;彭艳琼等,2003)。Abdurahiman和 Joseph(1976)年记载了对叶榕传粉榕小蜂的生态学和行为学,之后,他们又研究了影响对叶榕和传粉小蜂繁殖的两类非传粉榕小蜂(Abdurahiman & Joseph, 1978; Abdurahiman, 1986);Murray(1987, 1989, 1990)则通过系列文章报道了对叶榕果内传粉榕小蜂和非传粉榕小蜂的繁殖行为。直到20世纪90年代中期,Patel (1996, 1998)才把对叶榕及其传粉榕小蜂繁殖的特点结合起来进行研究,首先结合物候学观测,了解对叶榕及其传粉榕小蜂的繁殖特点;其次,弄清了对叶榕雌雄树是如何吸引传粉榕小蜂的,其研究表明,对传粉榕小蜂的吸引,雌雄树间没有明显差异。Patel 和Hossaert-Mckey (2000)还通过试验验证了单果进蜂量与种子生产和榕小蜂繁殖量的关系,比较了雌雄果接受传粉榕小蜂和繁殖功能上的差异。本研究将进一步探讨影响对叶榕及其传粉榕小蜂繁殖的因素,试验设计不仅考虑到雌雄榕果功能上的差异,还兼顾了与传粉榕小蜂共生在榕果内的非传粉小蜂;同时结合传粉榕小蜂进果行为的观察,完善了单果内实际进蜂量的统计方法。

1 材料和方法

1.1 研究材料

对叶榕,灌木或小乔木,雌雄异株,枝被糙毛。叶通常对生,厚纸质,卵状椭圆形或倒卵状长圆形,长10~25 cm,宽5~10 cm,全缘或有钝锯齿,叶面深绿色,粗糙,被短粗毛,侧脉每边6~9条;叶柄长1~4 cm,被短粗毛。榕果少有腋生或生于落叶枝上,多数生于老茎发出的下垂无叶枝上,陀螺形,成熟时黄色,直径1.5~3.8 cm,表面散生包片和糙毛;雄花生于雄株榕果内壁近口部,四周多圈排列,无花被,有膜,雄蕊1枚;瘿花生于内果腔,占据果腔80%,无花被,花柱近顶生,粗短;雌花生于雌株榕果内,无花被,子房红色,短椭圆形,花柱长,被毛,花间有刚毛。在西双版纳地区,主要分布在季节性雨林破坏后的荒地、城镇、村庄旁和房屋前后,是热带地区典型的先锋种。
随机选取8株结果的对叶榕作为研究材料。每株被选取的对叶榕相互距离最近150 m,最远450 m, 株高2.4~3.6 m,生长期约在10~15年之间,是对叶榕结实和生长最旺盛时期。
对叶榕传粉小蜂,雌雄异型。雌蜂有翅,体长1.8~2.2 mm,暗褐色;触角11节,第三节具突出附器,柄节扁平呈角状膨大。头近方形;上颚附器呈薄片状,下颚末端具棕毛,下唇长,近端部具明显2刚毛。前翅长,脉发达,痣脉大。足正常,后足腿节基部具尖突。各胫节末端具2齿。腹部较胸短宽,产卵器突出。雄蜂无翅,黄色至棕色;体长1.5~1.7 mm; 复眼小,颜面前端凹陷,呈洼状,触角短小,位洼中,明显3节。有2节不明显。前胸窄而长。前足跗节长,中后足腿节卵圆形。雄性外生殖器突出,骨化明显。
对叶榕小蜂在西双版纳热带地区年发生5~6代,在雾凉季温度低时,156~182 d才能完成一个世代;而干热带季28~35 d即可完成一个世代。除雌蜂从熟果采粉飞出寻找对叶榕雌花正在开放的雌雄株传粉或者产卵繁殖的很短时间(3~7 h)是在外生活外,其它所有虫态均是在隐头花序的果腔内渡过。雄蜂羽化后在果腔内交配和给雌蜂打出蜂口后,就随榕果成熟落地死亡或者被天敌捕食。

1.2 研究方法

1.2.1 雌花期单果内传粉榕小蜂数量统计

当不同样树上的榕果发育到雌花期,传粉榕小蜂便进入榕果果腔进行传粉或者是产卵,之后就死在果腔里。观察传粉榕小蜂的进蜂行为,并及时采集已经完成进蜂的榕果,分别统计死在顶生苞片通道内,以及死在果腔内的传粉榕小蜂个体数量。在4株雄树上共统计了182果,4株雌树上共统计了246果。

1.2.2 花后期单果内种子、榕小蜂及各类花数量统计

从两株雌株样树上分别采集了30个成熟的雌果,并对单果内的种子数量、败育花数量和总的雌花数量进行了统计。另外,从4株雄树上采集了92个雄花期的榕果,并用120目的纱网袋单果分装,待榕小蜂自然羽化、进入袋内后。及时收集榕小蜂,保存于70%酒精中,以便统计每个雄果内传粉榕小蜂和非传粉榕小蜂的数量。同时,统计该样果内正常瘿花数量、发育不良瘿花数量(瘿花形状小、干瘪,颜色暗,瘿花壁上没有出蜂孔)、未被产卵寄生的雌花数量,以及总的雌花数量。

1.3 分析方法

1)采用非参数检验中两个独立样本检验的方法,比较了雌雄果果腔内、苞片内夹死的小蜂数量,以及雌雄果内种子数量、传粉榕小蜂数量和雌花的数量。
2)用一元线性回归方法分析了影响雌果种子生产的因素。
3)由于影响雄果内传粉小蜂繁殖的因子较复杂,对该部分数据,首先借助SPSS统计软件给出4个因子相关系数矩阵,经Bartlett检验表明:Bartlett 值 = 107.74, p<0.001,即相关矩阵不是一个单位矩阵,同时计算出来的KMO值 = 0.574,该值越逼近1,表明对变量进行因子分析的效果越好。因此,本部分数据选择用因子分析方法,并且参考KMO值,其结果是可以接受的。之后结合主成分分析法,得到两个因子,其因子矩阵可以作为因子贡献大小的度量,变量与某一因子的联系系数绝对值越大,则该因子与变量关系越近。由于这两个因子的累计贡献率只有80.72%, 未达到85%的阈值,最后对矩阵进行了正交旋转。

2 研究结果与分析

2.1 雌雄果繁殖特征的差异

当榕果发育到雌花期时,开放的雌花释放出专一的化学物质吸引传粉榕小蜂拜访榕果,这些传粉榕小蜂一旦识别了雌花期的榕果,就会从榕果的顶生苞片口拼命往果腔里钻。虽然雌花期榕果接收传粉榕小蜂的时间为2~3 d,但是只要有一只传粉榕小蜂进入榕果,它便可以刺激榕果产生液体,逐渐封闭苞片层,苞片在液体的作用下也会逐渐收紧。若传粉榕小蜂进了苞片层已经收紧的榕果,就很难到达果腔,常被夹死在覆瓦状交叉排列的外层或中层苞片中。因此,并不是所有进入榕果的榕小蜂都能实现传粉或产卵的愿望,对于雌果,进入到果腔里传粉的榕小蜂仅占总进蜂量的52.06%±39.35%, 而在雄果里,实际进蜂率更低,仅为34.71%±27.02%,大部分被夹死在苞片通道中。无论是进入果腔内还是被夹死在苞片里的传粉小蜂数量,雌雄果之间均表现出显著差异(图1a),进入雌果单果腔内传粉榕小蜂数量 (2.72±2.04,n=246) 显著比雄单果内 (2.08±1.65,n=182) 的多(Mann-Whitney U=18 112,p<0.000 1),而夹死于苞片中的传粉榕小蜂数量是雄单果 (3.92±4.46,n=182) 比雌单果 (2.50±3.12,n=246) 显著多(U=17 561,p<0.000 1)。
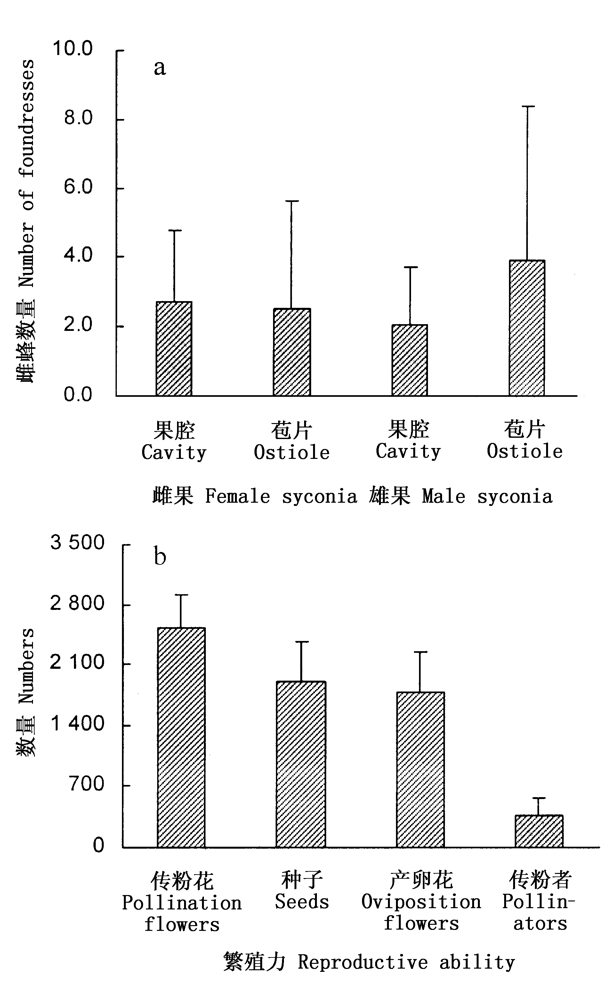
图1 对叶榕雌雄果进蜂量与繁殖率

Fig.1 The number of foundresses trapped inside the syconium cavity and in the ostiole and the reproductive ability between syconia and pollinators on Ficus hispida

对叶榕雌雄果在分工繁殖种子和供给传粉榕小蜂繁殖的进化过程中,已经呈现出各自相异的特征,除了单果进蜂数量有显著差异外,雌雄果供给传粉者传粉或者是产卵的雌花数量也有明显差异,雌果内的雌花显著比雄果内的雌花数量多 (U=597,p<0.000 1)。致使最后生产的种子数量和传粉者的数量也有显著差异(U=3,p<0.000 1)。自然状态下,雌株单果生产的种子数量 (1 891.63±471.53,n=69) 是雄株单果产生传粉榕小蜂数量 (367.20±208.02,n=92) 的5倍多(图1b)。

2.2 影响种子产生的因素

对叶榕雌雄性繁殖功能分开,雌株果实内雌花主要是接受榕小蜂传粉,受精的雌花最终发育成种子; 雄株果实内雌花主要供传粉榕小蜂产卵繁殖后代。传粉榕小蜂的数量能影响到种子数量的多少,当一定量的传粉榕小蜂进入到雌果果腔后,接受花粉的雌花数量将是影响种子生产的直接因素,两者有显著的正相关关系(R=0.668, p<0.001)。相应地没有接受到花粉或不能正常受精的雌花与种子生产呈显著的负相关关系(R=-0.591, p<0.001)(图2)。
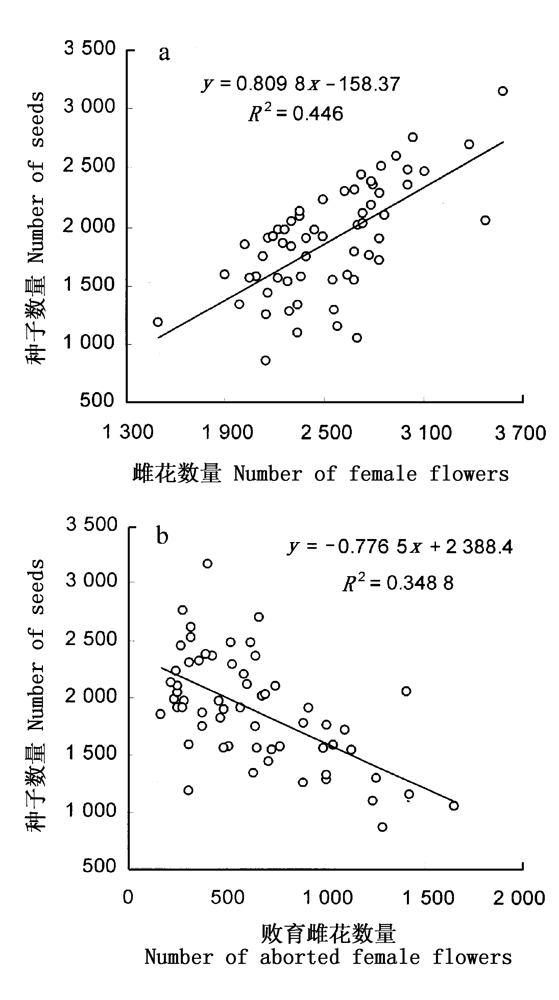
图2 雌花和败育花对种子生产的影响

Fig.2 The impact on seed production of female flowers and aborted female flowers

2.3 影响传粉榕小蜂繁殖的因素

雄株榕果内雌花子房是榕小蜂繁殖的场所,它的数量多少标志着榕小蜂产卵资源的匮乏与否。在对叶榕雄果内,传粉榕小蜂产卵仅利用了近1/3的雌花子房,雌花数量将不是抑制传粉小蜂产卵的直接因子,但是不断发育和膨大的瘿花逐渐充满着果腔,太多的进蜂和产卵量将由于空间的局限而致使产卵的雌花资源仍能间接影响到传粉榕小蜂的繁殖。
一旦传粉小蜂进到果腔里,其产下的后代数量,以及发育过程中死亡的个体数量将是影响传粉榕小蜂繁殖成功的两个因素。由于发育致死率的影响,对叶榕传粉小蜂的后代往往只有70%左右的个体能完成生活周期。其次,在对叶榕果里,除了传粉榕小蜂外,还共生着3类非传粉小蜂(Peng et al., 2005),这些非传粉小蜂与传粉榕小蜂是寄居或寄生的关系,最终直接导致传粉榕小蜂死亡,平均每果内可减少传粉者30多只(表1)。
表1 影响传粉榕小蜂繁殖的因子

Table 1 The factors of influencing reproduction on Ceratosolen solmsi marchali

雌花
Female flowers
瘿花
Galls
发育不良的瘿花
Aborted galls
非传粉者
Non-pollinators
平均值 Means 1 774.33 630.21 176.35 33.55
标准差 SD 467.97 325.59 187.92 38.17
从影响对叶榕传粉小蜂繁殖的寄主因素、传粉小蜂本身因素和共生的非传粉小蜂因素中,用主成份分析方法提取出两个因子。经正交旋转后,第一因子在瘿花、发育不良的瘿花、和雌花上有较高的荷载量,由于瘿花和雌花的数量可以反映榕小蜂的产卵率问题,而发育不良的瘿花和瘿花的数量则可以表述榕小蜂的发育致死率,因此第一因子可称为是与传粉榕小蜂自身繁殖力有关的因子。在第一因子中,传粉榕小蜂产卵制造的瘿花数量对其种群数量有最大的影响,影响次之的是发育过程中,死亡的个体数量,影响排在第三位的是寄主的雌花数量。第二因子只在非传粉者上有较高的荷载量,因而可称为影响传粉者繁殖的非传粉者因子,这些非传粉者是通过寄居或直接寄生的方式减少着传粉者的数量(表2)。
表2 正交因子解

Table 2 Rotated component Matrix

第一因子
The first factor
第二因子
The second factor
雌花 Female flowers 0.661 -0.541
瘿花 Galls 0.912 0.157
发育不良的瘿花 Aborted galls 0.879 0.125
非传粉者 Non-pollinators 0.195 0.903

3 讨论

关于对叶榕及其传粉榕小蜂的繁殖特点和规律,是雌雄异株榕树中研究最为详尽的一对材料。基于对传粉者和对叶榕自身因素的探讨,Patel 和 Hossaert-Mckey(2000)已经清楚地陈述:雌果内供给传粉的雌花比雄果内供给产卵的雌花数量多,并且进入雌果内传粉的雌蜂数量也比进入雄果内产卵的雌蜂多,进而导致雌果生产的种子数量远多于雄果内繁殖的传粉榕小蜂数量。我们的研究结果与Patel报道的结果相似,但是一个重要的差异是统计单果进蜂量的方法。Patel 用死于果腔内和苞片内的传粉雌蜂作为进入单果的总雌蜂数量,比较了对叶榕雌雄果的进蜂量,结果是:单个雌果进(3.9±2.0)只传粉榕小蜂,而单个雄果只进(2.3±2.0)只。然而,我们在观察传粉榕小蜂进果行为中,发现并不是所有进入榕果的传粉者都能正常地传粉或繁殖,只有进入果腔,接触到雌花的雌蜂才能完成传粉或产卵的功能,夹死在苞片内的雌蜂不能执行传粉或产卵的角色。Patel 曾把夹死在苞片中的雌蜂看作是已经进入果腔,完成传粉或产卵后企图逃离果腔的那部分蜂。当我们在解剖苞片层时,在覆瓦状排列的外层和中层苞片中,所有的雌蜂头部均朝着进入果腔的方向,偶有几只雌蜂头部是朝向果外的,这部分雌蜂也仅局限在接近果腔,呈垂直排列的内层苞片中。可见,一旦进入果腔,雌蜂就无法离开这个果。我们在大量的单果放蜂试验中也证实,如果给一个雌花期的榕果放进了一头雌蜂,两个小时内再给该果补放雌蜂,雌蜂还能进入果腔,若放蜂时间间隔长一些,补放的雌蜂往往被夹死在苞片中,要是到下一天再补放,传粉榕小蜂就不会再进这个果了。这些说明:虽然大家供认雌花期榕果接受传粉榕小蜂约为2~3 d,但实际进蜂时间是非常短暂的。在对叶榕上,夹死在苞片层中的雌蜂并不能记入实际进蜂量,更不能作为有效的繁殖雌蜂,因它未进入果腔进行传粉和繁殖就死亡在苞片中。由于本研究仅把进入果腔的雌蜂作为传粉或繁殖的有效雌蜂,因此,与 Patel 的结果相比,无论雄果还是雌果,单果进蜂量都较少,每个雌果进(2.72±2.04)只,而每个雄果进(2.08±1.65)只;但自然单果内,经传粉发育成种子的数量多达(1 891.63±471.53)粒, 相反,产卵后正常发育的传粉榕小蜂仅(367.20±208.02)只,比 Patel 统计的数量少(Patel & Hossaert-Mckey,2000)。
虽然瘿花壁上没有出蜂孔已经被认为是瘿花内小蜂发育不良,中途死亡的一个标志,但是这部分死亡的小蜂个体数量至今没有被关注(Murray, 1990; Patel & Hossaert-Mckey, 2000),本研究首次定量了传粉榕小蜂的发育致死性将导致30%左右的个体死亡,其对传粉者的繁殖影响仅次于总瘿花因素。前人研究对叶榕及其传粉榕小蜂,主要是就两者自身的繁殖特点进行研究,而没有介入其它的生物因子。虽然非传粉的榕小蜂与传粉榕小蜂和寄主榕果已经有一个相当长的协同进化历史,而且非传粉榕小蜂的存在没有威胁到传粉者与寄主榕果互惠体的稳定,但是在雌雄异株的榕树上,非传粉榕小蜂常在传粉小蜂进果繁殖之后才来到果外产卵,卵被产在已经有传粉榕小蜂卵或幼虫的瘿花里,甚至是直接产在传粉榕小蜂的体内,不同程度上减少着传粉者的数量(Weiblen et al., 2001)。在对叶榕果里,与传粉榕小蜂共生着3种非传粉小蜂,平均单果内,它们可减少30多只传粉者。这些定量的研究结果是对前人研究的有益补充,并可为进一步探讨榕树和传粉榕小蜂的繁殖成功提供参考。
[1]
Abdurahiman UC, Joseph KJ (1976). Observations on the biology and behavior of Ceratosolen marchali Mayr (Agaonidae). Entomology, 1,115-122.

[2]
Abdurahiman UC, Joseph KJ (1978). Biology and behavior of Apocrypta bakeri Joseph (Torymidae), a cleptoparasite of Ceratosolen marchali Mayr (Agaonidae). Entomology, 3,31-36.

[3]
Abdurahiman UC (1986). Biology and behavior of Philotryesis pilosa Mayr (Torymidae). Bulletin of Entomology, 27,121-127.

[4]
Herre EA (1989). Coevolution of reproductive characteristics in 12 species of New World figs and their pollinator wasps. Experientia, 45,637-647.

[5]
Murray MG (1987). The closed environment of the fig receptive and its influence on male conflict in the cold world fig wasp, Philotrypsis pilosa. Animal Behaviour, 35,438-506.

[6]
Murray MG (1989). Environmental constrains on fighting in flightless male fig wasps. Animal Behaviour, 38,186-193.

[7]
Murray MG (1990). Comparative morphology and mate competition of flightless male fig wasps. Animal Behaviour, 39,434-443.

[8]
Patel A (1996). Variation in a mutualism: phenology and the maintenance of gynodioecy in two Indian fig species. Journal of Ecology, 84,667-680.

[9]
Patel A (1998). Wasp composition in inflorescences of two dioecious fig species—Implications for the fig-wasp mutualism. Biotropica, 30,474-480.

[10]
Patel A, Hossaert-Mckey M (2000). Components of reproductive success in two dioecious fig species, Ficus exasperata and Ficus hispida. Ecology, 81,2850-2866.

[11]
Peng YQ(彭艳琼), Yang DR (杨大荣), Zhou F(周芳), Zhang GM(张光明), Song QS(宋启示) (2003). Pollination biology of Ficus auriculata Lour. in tropical rainforest of Xishuangbanna. Acta Phytoecologica Sinica (植物生态学报), 27,111-117. (in Chinese with English abstract)

[12]
Peng YQ(彭艳琼), Yang DR (杨大荣), Su SJ (苏绍菊) (2002). Insect communities of Ficus auriculata and Ficus hispida. Forest Research (林业科学研究), 15,136-142. (in Chinese with English abstract)

[13]
Peng YQ, Yang DR, Wang QY (2005). Quantitative tests of interaction between pollinating and non-pollinating fig wasps on dioecious Ficus hispida. Ecological Entomology, 30,70-77.

[14]
Weiblen GD, Yu DW, West SA (2001). Pollination and parasitism in functionally dioecious figs. Proceedings of the Royal Society of London Series B-Biology Science, 268,651-659.

DOI PMID

[15]
Yang DR, Peng YQ, Song QS, Zhang GM, Wang RW, Zhao TZ, Wang QY (2002). Pollination biology of Ficus hispida in the tropical rainforests of Xishuangbanna, China. Acta Botanica Sinica (植物学报), 44,519-526.

[16]
Zhang XS(张秀实), Wu ZY(吴征镒), Cao ZY (曹子余) (1998). Flora, Reipublicae Popularis Sinicae. Tomus 23(1)(中国植物志,第二十三卷第一分册). Science Press, Beijing,193-194. (in Chinese)

Outlines

/

〈 〉