Original article

POLLINATION ECOLOGY OF GENTIANA LAWRENCEI VAR. FARRERI, A LATE-FLOWERING QINGHAI-TIBET PLATEAU SPECIES

  • HOU Qin-Zheng 1, 3 ,
  • DUAN Yuan-Wen 2 ,
  • SI Qing-Wen 1, 3 ,
  • YANG Hui-Ling , 1, *
Expand
  • 1 Key Laboratory of Adaptation and Evolution of Plateau Biota, Northwest Institute of Plateau Biology, Chinese Academy of Sciences, Xining 810001, China
  • 2 Institute of Tibetan Plateau Research at Kunming, Chinese Academy of Sciences, Kunming 650204, China
  • 3 Graduate University of Chinese Academy of Sciences, Beijing 100049, China

Received date: 2009-03-31

  Accepted date: 2009-07-13

  Online published: 2021-04-29

Abstract

Aims Gentiana lawrencei var. farreri (Gentianaceae), a late-autumn or early-winter flowering alpine perennial, is distributed mainly in the northeastern Qinghai-Tibetan Plateau (QTP). The environment of the QTP is harsh because temperature is low and insects are scarce. Our aim is to examine the pollination ecology of G. lawrencei and its adaptive relationship with the environment.
Methods The pollination ecology of G. lawrencei was documented for three consecutive years in northeastern QTP. The breeding system was tested and floral visitors were observed during the flower life span. Flower longevity was recorded and stigma receptivity was tested by the seed-set ratio of different days in which the stigma was presented.
Important findings The seed-set of G. lawrencei under natural conditions was extremely low because of pollen-limitation. Combined characters of herkogamy and incomplete dichogamy indicate that pollinators are needed for complete pollination. Some individuals of G. lawrencei could produce seeds under bagging without emasculation, and it may be from selfing caused by thrips and ants. Bombus kashmirensisand B. sushikini are effective pollinators of G. lawrencei, but the frequencies of visits are extremely low (0.006 and 0.005 time·flower-1·h-1, respectively). Floral longevity and stigma receptivity are relatively long compared with other Gentianaceae species, and these increase the probability of pollination chances under low temperature and low pollinator conditions. The combination of self- and cross-pollination, as well as the prolonged floral longevity and stigma receptivity, may be the main reason for the survivorship of G. lawrencei.

Cite this article

HOU Qin-Zheng , DUAN Yuan-Wen , SI Qing-Wen , YANG Hui-Ling . POLLINATION ECOLOGY OF GENTIANA LAWRENCEI VAR. FARRERI, A LATE-FLOWERING QINGHAI-TIBET PLATEAU SPECIES[J]. Chinese Journal of Plant Ecology, 2009 , 33(6) : 1156 -1164 . DOI: 10.3773/j.issn.1005-264x.2009.06.016

青藏高原恶劣的生态环境, 如低温、多雨和强辐射, 不但影响着高山植物的生长发育, 而且还影响着植物与动物的相互关系。与低海拔地区相比, 高山环境中较低的温度能减弱昆虫的活动能力和访问频率(Arroyo et al., 1985; Bingham & Orthner, 1998), 进而可能降低异交植物的繁殖成功率; 由于高山环境中昆虫的种类和活动频率降低, 许多异交的高山植物可能存在着一定程度的传粉限制(段元文等, 2007; Duan et al., 2007; 侯勤正等, 2008)。但是, 已有统计结果表明, 随着海拔增加, 异交植物在植物群落中并没有显著降低(Arroyo et al., 1985)。在其他高山地区, 发现部分高山植物物种通过延长其花的持续时间(Bingham & Orthner, 1998; Blionis et al., 2001; Duan et al., 2007)和增加对繁殖功能的资源分配(Fabbro & Körner, 2004)维持其异交机制。
高山环境的生长季节短, 同一生长季节内温度呈现“低―高―低”的变化过程, 温度变化必然影响昆虫的活动能力(Kudo,1993), 而不同时期开花的高山植物也有不同的繁殖策略。Molau (1993)统计了137种北极、亚北极和高山冻原植物的繁殖特点后发现, 北极和高山植物的繁殖对策与开花物候具有很强的相关性。例如, 早期开花的植物以异交为主, 且在自然状态下的结籽率非常低, 而由于在生长季节早期昆虫的种类少、活动能力差, 因此早期开花的高山植物散布花粉存在风险, 属于花粉风险型(Pollen-risking)策略, 采用这种策略的植物由于受到花粉胁迫, 其花寿命倾向于增长; 而晚期开花的高山植物以自交为主, 且结籽率较高, 但由于环境温度逐渐降低, 受精胚珠的发育时间可能不够而导致种子成熟存在困难, 属于种子风险型(Seed-risking)策略, 采用这种策略的植物由于受到种子胁迫, 其花寿命倾向于缩短(Molau, 1993)。但是, 需要指出的是, 并非所有晚期开花的极地和高山植物都以自交为主, 在青藏高原地区的生长季节晚期(9月底), 有许多植物开花并具有阻止自交的花特点(如雌雄异熟、雌雄异位), 例如线叶龙胆(Gentiana lawrencei var. farreri)和蓝玉簪龙胆(G.veitchiorum)。 那么, 这类晚期开花植物采取什么繁殖策略维持种群的繁殖?对这类植物的传粉生态学研究将拓宽对高山植物繁殖策略的理解。
线叶龙胆主要分布在青藏高原2 400~4 000 m的地区(Ho & Liu, 2001), 正如上文指出, 线叶龙胆的开花时间主要集中在9月底到10月底, 属于标准的晚期开花高山植物。初步观察结果表明线叶龙胆具有雄性先熟和雌雄异位的特点, 说明该物种不能通过自动自交产生种子, 然而由于线叶龙胆花期较晚, 而此时高原地区温度较低, 因此我们预测线叶龙胆的传粉昆虫的访花频率非常低。但是, 一个令人感兴趣的现象是, 青藏高原地区线叶龙胆的种群密度(线叶龙胆簇生在一起, 种群密度不便统计)和花密度非常高(盛花期平均为36.5朵·m-2), 似乎表明该物种具有极强的繁殖能力。那么, 线叶龙胆到底依赖何种方式繁殖?线叶龙胆的花特点和开花特征使其成为研究晚期开花高山植物繁殖策略的一个理想材料, 因此本研究通过在青藏高原海北站地区对线叶龙胆3年的连续观察和实验, 探讨研究晚期开花高山植物的繁殖策略, 重点回答以下3个问题: 1)线叶龙胆的繁育系统特点是什么?与其他龙胆科植物是否一致?2)线叶龙胆的传粉昆虫是否和其他龙胆科植物一致?其传粉频率高还是低?3)线叶龙胆花寿命和柱头可授性能力是否如Molau理论(Molau, 1993)所认为的那样由于晚花期植物种子胁迫的存在而缩短?

1 材料和方法

1.1 研究时间和地点

观察和试验于2006~2008年9~11月在青海省门源县中国科学院海北高寒草甸生态系统定位研究站(以下简称海北站)开展。海北站位于青藏高原东北部(37°29′~37°45′ N, 101°12′~101°23′ E, 海拔3 200 m), 年平均气温-1.7 ℃(最高气温达27.6 ℃; 最低气温为-37.1 ℃), 平均降水为426~860 mm, 降水多集中在5~9月。

1.2 研究材料

线叶龙胆为龙胆科龙胆属多年生草本植物, 高5~12 cm。花枝多数, 丛生, 铺散。莲座丛叶极不发达, 披针形, 长4~6 mm, 宽2~3 mm。花单生枝顶, 上部天蓝色, 下部黄绿色, 具蓝色条纹, 倒锥状桶形, 长4.5~6.0 cm。线叶龙胆主要分布于海拔2 400~4 600 m的高山草甸和山谷草滩。开花期在9月底到10月底。

1.3 花综合特征

1.3.1 花粉胚珠比例(P/O)

随机摘取10个花蕾固定于FAA固定液中, 室内把每朵花的全部花药取出, 置于盛有蒸馏水的离心管中, 然后挤碎, 使花粉散布于水中, 加水至1 mL, 充分摇匀后, 用移液枪取出1 μL, 置于显微镜下计数花粉数, 重复5次计算平均值, 得出每花的平均花粉数目; 剖开子房, 在光学显微镜(Olympus BH-2, Olympus Corporation, Tokyo, Japan)下统计胚珠数目。计算花粉胚珠比例(P/O), 以初步判断线叶龙胆的交配系统类型。

1.3.2 开花过程

随机选取并标记20朵蕾期花朵, 从2007年9月13日开始, 对其进行开花期间的全程观察, 记录每个花蕾的开花时间、花药散粉时间、散粉结束时间、柱头张开时间和花萎蔫时间。线叶龙胆具有暂时性花闭合现象。我们的观察从每天8:30开始(此时花未开), 直到当天20朵花全部暂时性闭合后(18:00~18:30之间)结束。2007年9月29日, 20朵花全部永久性闭合后结束观察。
此外, 在2006年随机选取并标记10个花蕾, 用尼龙袋对其进行套袋隔离。每天10:00记录线叶龙胆的开花状态。标记10朵雄性阶段线叶龙胆花朵, 柱头张开后人工补充授粉, 每天10:00和16:00各授粉一次, 直到花永久性闭合, 记录雌性阶段花持续时间。

1.3.3 花蜜量检测

在2006年线叶龙胆盛花期连续两个晴天的9:00和13:00, 分别对随机选取的10朵花进行花蜜量的测量。用10 μL玻璃毛细管对线叶龙胆每朵花内的所有蜜腺进行花蜜吸取, 每测一个蜜腺, 用游标卡尺测量一次花蜜在毛细管内的长度(即体积), 然后换新的玻璃毛细管继续测量其他蜜腺, 最后算出总和, 得出单花花蜜量。

1.4 花粉活力检测

花粉活力检测方法采用花粉的萌发率法(Dafni, 1992)。在2007年线叶龙胆盛花期, 连续6 d 每天9:00选择5朵刚刚开放的花, 套袋隔离昆虫以避免花粉损失。在第6 d取下所有花的花药, 放在盛有10%的蔗糖溶液的离心管中, 室温放置24 h后, 放在4 ℃冰箱中停止萌发, 室内光学显微镜(Olympus BH-2, Olympus Corporation, Tokyo, Japan)下统计花粉的萌发情况。用花粉的萌发率表示花粉活力。

1.5 柱头可授性检测

在2008年盛花期, 连续12 d每天9:00选取40朵柱头刚刚开放的花, 去雄后, 套袋隔离昆虫。在该处理的最后一天(第12 d)下午, 把每天选取的40朵花平均分成两组: 第一组用10 m外的刚刚开放的花的花粉(保证异交)进行人工授粉; 第二组用同一植株上(同株自交)刚刚开放花的花粉人工授粉。如果遇到天气原因线叶龙胆不开花, 则授粉时间顺延, 保证自交和杂交的柱头可授性试验各进行12 d。另外, 根据12 d自交和杂交结籽率的最高平均值, 计算出线叶龙胆的自交亲和指数(Self-compatibility index, SCI), 以此推断线叶龙胆的自交亲和性(Becerra & Lloyd, 1992)。

1.6 繁育系统检测

2006和2008年盛花期开始前, 在样地中选取90朵花做以下3种处理(每种处理各30朵): 1)去雄后自然传粉(Nature pollination after emasculation); 2)不去雄套袋(Bagging without emasculation); 3)去雄套袋(Bagging after emasculation)。另选30朵自然授粉(Natural pollination)的花作为对照。其中, 所有去雄和套袋处理都在柱头未张开前进行, 而处理2)在花蕾期进行。在果实成熟但未开裂前采集种子, 带回实验室计数成熟种子数、不成熟种子数和败育胚珠数, 计算结籽率。结籽率=成熟种子 数/(成熟种子数+不成熟种子数+败育胚珠数)。

1.7 传粉昆虫的观察

2006年的昆虫观察与开花动态观察同时进行。在20朵花开放的17 d时间里, 记录访问每一朵花的每一个昆虫, 并记录访花时间和访花行为。在观察结束后, 捕捉访花的昆虫种类并制作成昆虫标本, 送交中国科学院动物研究所鉴定。2007年昆虫观察在9月18日到9月21日的8 h里进行。2008年的昆虫观察在9月2日到9月6日的20 h里进行。两年的昆虫观察方法都是每天选取一定范围内的花(30~100朵)作为观察对象, 观察并记录所有到访的昆虫。

1.8 统计分析

所有数据平均值的计算与统计分析均在SPSS 11.0统计分析软件中进行, 在比较前, 先用非参数检验(Nonparametric test)中的单样本K-S检验(1-Sample K-S test)检验数据是否服从正态分布。对于服从正态分布的数据, 用独立样本T检验(Independent-samples T test)比较两组数据的差异, 而用单因素方差分析(One-way ANOVA)和Post hoc-LSD比较3组或者3组以上数据的差异; 对于不服从正态分布的数据, 用非参数检验中2 Independent Samples比较两组数据的差异, 用K Independent Samples比较3组或者3组以上数据的差异。文中及图、表中的所有数据均用平均值±标准偏差(Mean ±SD)表示, n表示样本量。

2 结果

2.1 花综合特征

线叶龙胆的花粉数目为147 800 ± 60 200 ( n=10), 胚珠数目为225 ± 90 ( n=10), P/O为694 ± 245 ( n=10), 其繁育系统应该属于兼性异交。
线叶龙胆开花后, 5个花药占据花中心位置并包围雌蕊, 柱头位于花药的下方。线叶龙胆花张开后, 花药即开始开裂散粉, 自然状态下散粉持续时间大约为6 d。花开放后花柱随后逐渐伸长, 大约2 d后在高于花药(0.44 ± 0.25) cm ( n=43)的位置张开。柱头张开后, 花药贴在花柱周围, 一直持续到花永久性闭合。这些结果表明: 线叶龙胆具有雌雄异熟和雌雄异位的花特点, 但雌雄异熟并不完全。在隔离昆虫状态下, 线叶龙胆的雄性阶段和雌性阶段的花持续期都比自然状态下长, 而在补充授粉状态下的花雌性阶段持续期要明显短于自然状态和隔离昆虫状态(表1)。
表1 线叶龙胆在自然状态、隔离昆虫和补充授粉条件下的花雄性期、雌性期和总花期(平均值±标准偏差)

Table 1 The male, female phase and total longevity of Gentiana lawrencei var. farreriunder natural, insects-isolated and artificially pollinated conditions (mean±SD)

处理 Treatments 雄性期 Male phase 雌性期 Female phase 总花期 Total longevity
自然状态 Natural pollination 2.2 ± 0.9 ( n=20)a 8.3 ± 3.2 ( n=20)a 10.5 ± 3.4 ( n=20)a
隔离昆虫 Isolation insects 3.9 ± 1.5 ( n=10)b 11.4 ± 3.0 ( n=10)b 15.3 ± 2.7 ( n=10)b
补充授粉 Supplemental pollination - 3.7 ± 0.5 ( n=10)c -

同一列中数据后不同字母表示差异达到显著水平(p<0.05) Values within the same column with different letters are significantly different atp<0.05

线叶龙胆在9:00时产生花蜜量为(11.01 ± 6.9) μL ( n=20), 13:00时产生花蜜量为(7.01 ± 6.2) μL ( n=20), 两者之间不存在显著差异(t=2.508, p=0.46), 总的平均花蜜量为9.05 μL。

2.2 花粉活力检测

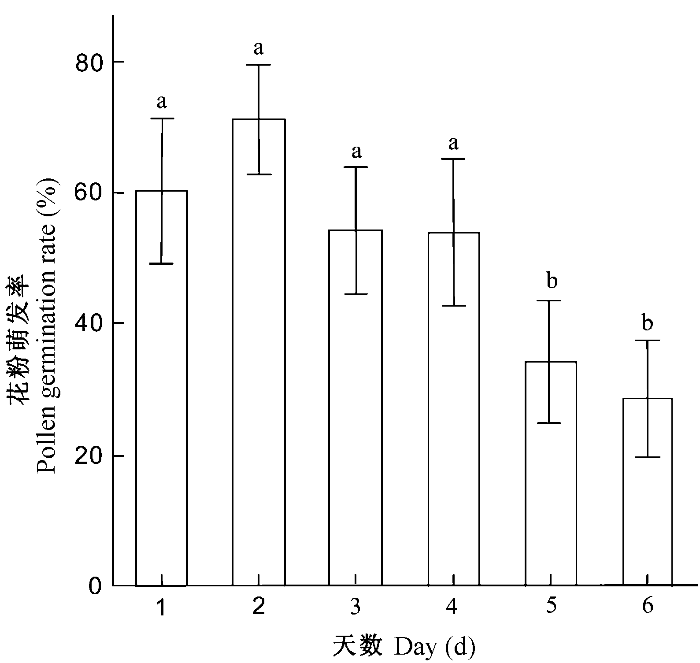
线叶龙胆花粉萌发率在花张开后4 d都相对较高(>45%) (图1), 4 d内没有显著性差异; 第5 d和第6 d的花粉萌发率明显降低(<30%) (图1), 说明有效的花粉活力大约可以维持4 d; 花粉活力虽然从第5 d开始降低, 但直至第6 d仍具有一定的萌发能力。
图1 线叶龙胆在不同天数的花粉萌发率 (平均值±标准偏差)

不同的字母表示在0.01水平上有显著性差异 Different letters indicate significant difference at p=0.01

Fig. 1 Pollen germination rate of Gentiana lawrencei var.farreri at different days (mean±SD)

2.3 柱头可授性检测

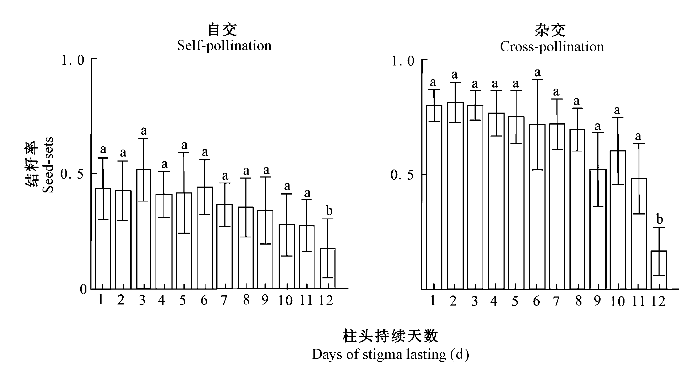
线叶龙胆的自交结籽率相对杂交结籽率较低(图2), 但无论自交或杂交的结籽率在前11 d都不存在显著性差异, 且维持在一个比较高的水平, 而第12 d的结籽率显著低于前11 d, 说明线叶龙胆的柱头可授能力可以持续11 d (图2); 线叶龙胆自交结籽率最高出现在第3 d (0.52), 杂交结籽率最高出现在第2 d (0.81), 其SCI指数为0.64。
图2 线叶龙胆柱头在不同的持续天数分别在自交和杂交情况下的结籽率(平均值±标准偏差)

同一处理内不同的字母表示在0.01水平上有显著性差异 Different letters in the same treatment indicate significant difference at p=0.01

Fig. 2 Seed-set of Gentiana lawrenceivar. farreri obtained after self- and cross-pollination at different days of the stigma lasting (mean±SD)

2.4 繁育系统检测

两年间自然状态下线叶龙胆的结籽率非常低, 但是其坐果率较高, 而去雄后自然授粉结籽率和坐果率都非常低(表2); 两年套袋不去雄处理都具有种子, 但是其坐果率较低, 说明线叶龙胆部分花具有自交能力; 去雄套袋处理的结籽率几乎为零, 说明线叶龙胆不存在无融合生殖现象(表2); 各种处理的结籽率在年际之间没有显著性差异(表2)。
表2 线叶龙胆在2006年和2008年繁育系统中4种处理的结籽率(平均值±标准偏差)

Table 2 Seed sets of four different breeding treatments of Gentiana lawrencei var. ferreri in 2006 and 2008 (mean±SD)

处理
Treatments
年份 Year 显著性
Sig.
2006 2008
自然状态
Natural pollination
0.17 ± 0.19 ( n=20, fr=0.70)a 0.10 ± 0.10 ( n=24, fr=0.63)a 0.19
去雄后自然传粉
Natural pollination after emasculation
0.10 ± 0.22 ( n=20, fr=0.43)b 0.05 ± 0.05 ( n=25, fr=0.36)b 0.91
套袋不去雄
Bagging without emasculation
0.04 ± 0.08 ( n=20, fr=0.43)b 0.06 ± 0.15 ( n=27, fr=0.13)b 0.44
去雄套袋
Bagging after emasculation
0 (n=20, fr=0)c 0 (n=30, fr=0)c -

同一列中数据后不同字母表示差异达到显著水平(p<0.01) Values within the same column with different letters are significantly different atp<0.01fr: 坐果率 Fruit-set ratio

2.5 传粉昆虫观察

通过2006年17 d 91.5 h对20朵花的访花昆虫观察(花开放期间会由于突然天阴或降雨, 导致花闭合, 这种情况下不再进行访花昆虫的观察), 发现蓟马(Thripidae spp.)和蚂蚁(Formica spp.)是最常见的访花昆虫。除此之外, 还发现了蜜蜂(Apis spp.)、克什米尔熊蜂(Bombus kashmirensis)和苏氏熊蜂(B. sushikini) 3种访花昆虫。
小型昆虫蓟马和蚂蚁多在花内基部靠近蜜腺附近活动, 且数目较多(一朵花内蓟马数为3~5只, 蚂蚁2~3只), 但一朵花内蓟马和蚂蚁一般不同时存在; 主要以花蜜为食, 偶尔能爬到位置较高的花药附近取食花粉。
蜜蜂访花时身体停留在花冠口, 头部探入花内, 用口器探食花粉。蜜蜂更偏向于访问雄性阶段的花, 共观察到31次蜜蜂访花, 其中, 访问雄性阶段的花29次。另外, 蜜蜂在访问雌性阶段的花时(共发现2次), 并未发现其身体与柱头接触, 因此我们推测蜜蜂访花的传粉贡献很小或者可以忽略。
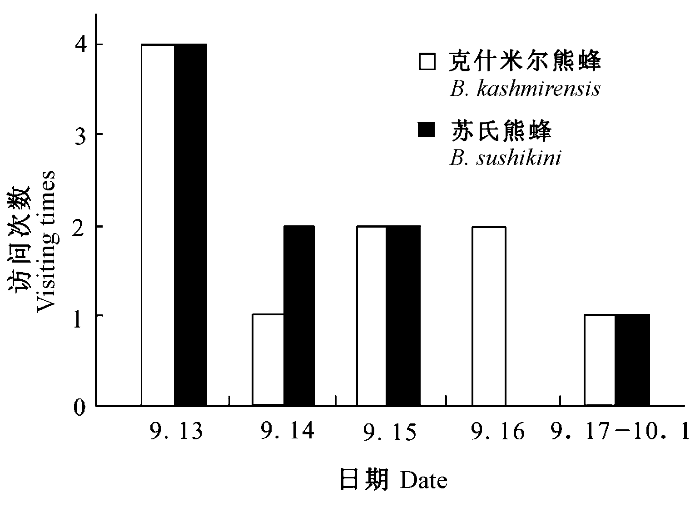
克什米尔熊蜂是线叶龙胆比较常见的访花昆虫, 其访花行为可分为两类: 一种是花蜜盗食, 一种是花蜜正常取食。克什米尔熊蜂盗食时先在花冠口绕一下, 然后转到花冠外侧基部, 用上下颌在有或无萼片包被处扎眼, 然后把舌伸进去取食花蜜, 有时在花冠口绕一下, 就飞向另一朵花。没有发现克什米尔熊蜂盗蜜时会接触柱头或者花药, 因此没有统计该访花行为的频率。克什米尔熊蜂正常取食花蜜时身体钻进花内, 但由于花冠管长度相对克什米尔熊蜂舌长较长, 克什米尔熊蜂在刚进入花内时有比较剧烈的活动, 试图把口器伸到花冠基部的蜜腺, 在这个过程中克什米尔熊蜂的胸腹部均会接触柱头或者花药。大约10 s后克什米尔熊蜂的活动停止, 然后慢慢从花内爬出, 此缓慢过程增大了克什米尔熊蜂身体和花性器官的接触。克什米尔熊蜂从花内爬出后会在花冠口做短暂停留, 用前足清洗身体, 然后飞走。克什米尔熊蜂飞走后一般不会在上次访问的花附近继续访花, 而是飞出很远或者超出视野范围。在20朵花的整个开花过程监测中, 共发现克什米尔熊蜂正常取食花蜜10次, 雄性花和雌性花各被访问5次, 平均访花频率为0.006 time·flower-1·h-1。克什米尔熊蜂的10次访花在观察第1 d出现4次, 第2 d出现1次, 第3 d出现2次, 第4 d出现2次, 第5 d出现1次(图3)。
图3 2006年克什米尔熊蜂和苏氏熊蜂对线叶龙胆每个观察日的访问次数

Fig. 3 Visiting times of Bombus sushikini and B. kashmirensison Gentiana lawrencei var.farreri at different days in 2006

苏氏熊蜂的访花行为和克什米尔熊蜂的正常取食花蜜非常相似, 只是苏氏熊蜂身体比克什米尔熊蜂更大, 其飞行速度和在花内的活动也更缓慢。在20朵花的整个开花过程中, 共发现苏氏熊蜂9次访花, 5次访问雄性花, 4次访问雌性花, 平均访花频率为0.005 time·flower-1·h-1。苏氏熊蜂的9次访花中4次出现在花开第1 d, 2次出现在第2 d, 2次出现在第3 d, 1次出现在第9 d (图3)。
2007年共发现2只苏氏熊蜂访花, 6只克什米尔熊蜂正常访花(正常取食花蜜行为, 下同), 没有发现蜜蜂访花; 2008年共发现2只克什米尔熊蜂正常访花, 没有发现苏氏熊蜂和蜜蜂访花。另外, 2年间都发现蓟马和蚂蚁在线叶龙胆花内活动, 对克什米尔熊蜂花蜜盗食行为未做统计。
克什米尔熊蜂舌长为(1.22 ± 0.38) cm ( n=19), 苏氏熊蜂舌长为(1.30 ± 0.39) cm ( n=20), 线叶龙胆花蜜通道长度为(3.05 ± 0.49) cm ( n=25)。线叶龙胆花蜜通道长度显著长于2种访花昆虫舌长 (F = 214.8, df = 2, p<0.000 1)。

3 讨论

3.1 繁育系统

线叶龙胆在自然状态下的结籽率很低, 在杂交状态下的结籽率较高, 说明线叶龙胆存在严重的花粉限制。线叶龙胆的SCI指数为0.64, 属于部分自交亲和物种(Partly self-compatible species) (Becerra & Lloyd, 1992); 线叶龙胆的花具有雌雄异位和不完全雌雄异熟的特点。自交不亲和、雌雄异熟和雌雄异位是促进异交、避免单花自交的重要机制(Lloyd & Webb, 1986; Webb & Lloyd, 1986; Bhardwaj & Eckert, 2001; Ishii & Sakai, 2002; Anderson et al., 2003), 但是很多物种在异花传粉者不足等选择压力下, 能够演化出自交亲和或者依赖自交的种群和个体(Herlihy & Eckert, 2005)。在异交向自交的转变过程中经常会伴有某些花特征的变化(Plitmann & Levin, 1990; Goodwillie & Stiller, 2001), 其中最常见的就是自交不亲和系统的崩溃(Lloyd, 1965)、花雌雄性功能展现时间的重叠(不完全雌雄异熟) (Bertin & Newman, 1993)以及花雌雄距离之间的缩小(Goodwillie & Stiller, 2001)等。线叶龙胆部分自交亲和和雌雄不完全异熟为单花自动自交(Autonomous selfing)提供了前提条件, 但雌雄异位完全阻止了单花的自动自交现象。然而, 线叶龙胆的花药在柱头张开后不向花内壁移动, 而是紧贴在花柱上, 花药和柱头间的距离较短(0.44 mm), 因此昆虫在花内的活动可能会引起协助自交(Facilitated selfing)。本研究中线叶龙胆套袋不去雄处理的花存在结实现象, 但由于线叶龙胆不能自动自交, 因此协助自交现象才是套袋不去雄处理结实的主要原因。线叶龙胆的花中, 蓟马和蚂蚁的数量比较多, 而套袋处理无法隔离蓟马和蚂蚁这类小型昆虫。然而, 它们接触花药或者柱头只是偶然行为, 而且由于其身体较小, 推测其对传粉贡献也比较小, 这可以解释套袋不去雄处理下线叶龙胆的结籽率比较低的现象(表2)。线叶龙胆的P/O为694 ± 245, 这与兼性异交的物种相似(Dafni, 1992), 这也说明线叶龙胆同时具有异交和自交的混合交配系统。虽然曾经报道过的麻花艽(Gentiana straminea)和管花秦艽(G. siphonantha)等龙胆科植物也具有异交和自交的混合交配系统(何亚平和刘建全, 2003; Duan et al., 2005; 侯勤正等, 2008), 但线叶龙胆繁育系统中导致异交的隔离机制(自交不亲和、雌雄异熟和雌雄异位)都是非完全状态, 因而会造成同株同花自交。

3.2 传粉昆虫

龙胆科植物被认为是典型的熊蜂(Bombus spp.)传粉植物, 这在许多报道中得到验证(Spira & Pollak, 1986; 段元文和刘建全, 2003; 何亚平和刘建全, 2003; Duan et al., 2005, 2007; 侯勤正等, 2008), 我们的研究结果也证实了这个观点。但是熊蜂对线叶龙胆的访问频率非常低, 远远低于同域分布的管花秦艽(0.026 time·flower-1·min-1)或者麻花艽(0.005 time·flower-1·min-1)的访花频率(何亚平和刘建全, 2003; Duan et al., 2005; 侯勤正等, 2008)。海北站地区10月份最高温度为5 ℃(海北站气象站提供数据), 较低的气温可能是熊蜂活动频率降低的主要原因之一。另外, 尽管线叶龙胆产生较大量的花蜜(9.02 μL), 但是其花蜜通道长度要大于克什米尔熊蜂和苏氏熊蜂的舌长, 两种熊蜂通过正常的访花行为不能得到足够的报酬, 因此这种传粉行为无法长期稳定存在(Grant & Temeles, 1992; Hodges, 1995), 这也可能是造成两种熊蜂访花频率较低的另外一个重要原因。本文还发现两种昆虫的访花主要集中在开花的前期(图3), 而且多数访问都是在访问一朵后即不再访问第二朵花, 因此推测这是熊蜂的一种学习行为(Fritz, 1990; Smithson & Macnair, 1997; Internicola et al., 2006)。

3.3 花持续期和柱头接受能力

对于需要传粉媒介才能完成受精的植物而言, 花持续期和柱头可授能力直接影响到花粉的移动和接受(Schoen & Ashman, 1995; Bingham & Orthner, 1998)。另一方面, 花粉散布的几率和柱头接受花粉的几率会影响到花持续时间(Ashmen & Schoen, 1994), 因此花的展现时间以及柱头的可授能力要适应于植物所处的非生物环境以及传粉媒介对花的作用能力。青藏高原地区海拔较高, 气候环境恶劣, 对虫媒被子植物的最直接影响就是传粉昆虫的减少和活动频率的的降低, 这种情况对晚期开花植物的影响会更加明显。线叶龙胆属于晚花期植物, 其昆虫传粉频率很低, 但是自然状态下其花持续期为10.5 d, 在套网状态下为15.3 d (表1), 而柱头可授能力大约可维持11 d (图2), 这种花持续期和柱头可授能力高于已报道的其他龙胆科植物(Petanidou et al., 2001; Molau et al., 2005; Duan et al., 2005, 2007; 侯勤正等, 2008)。较长的花持续期和柱头可授能力延长了花粉和柱头的展现时间, 从而增加了昆虫的访花几率, 进而增加了花粉移动以及柱头对花粉的接受几率, 这是对动物访花频率低的一种补偿机制(Primack, 1985)。花寿命的延长是高山晚花期植物应对较低昆虫访花频率的一种“机会主义”有性繁殖策略, 但是这种策略无疑是对高山不利环境的有效适应。另外, 根据Molau (1993)的理论, 早花期植物花寿命由于受到花粉胁迫(Pollen risk)而倾向于增长, 晚花期植物的花寿命则由于受到种子胁迫(Seed risk)而倾向于缩短。本文的研究显然是Molau理论的一个例外。但是由于种子胁迫现象的存在, 线叶龙胆的花寿命会受到一定限制而不会无限延长。同样, Ashmen和Schoen (1994)也指出花寿命的最优时间要权衡植物对资源的利用。线叶龙胆在补充授粉状态下的花寿命大大小于自然状态下的花寿命, 因此是一种传粉诱导的花闭合现象(He et al., 2006)。这种花闭合现象降低了植物对花的维持代价(何亚平等, 2005; Roberts et al., 2007), 其适应意义正如He等(2006)所指出的花寿命的可塑性变化权衡了植物本身的适合度利益和能量节约原则。花寿命的延长和传粉诱导的花闭合两个相结合的特点, 不但提高了花的授粉机会, 而且权衡了植物资源上的利用, 在很大程度上提高了线叶龙胆对高山不利环境的适合度, 这是一种对胁迫环境的适应性机制(Jones & Cruzan, 1999; Roberts et al., 2007)。这种适应性机制可能是线叶龙胆在高原地区较晚生长季下赖以存活和延续的一个重要原因, 但是它是否具有普遍意义仍然是值得深入研究的课题。

4 总结

本文的研究结果表明: 线叶龙胆具有和其他龙胆科植物相似的繁育系统特点, 尽管具有兼性的繁育系统, 但是其自交能力和异交能力低, 自然结实率数量少; 蓟马和蚂蚁等小型昆虫可能会造成线叶龙胆的协助自交; 熊蜂类传粉昆虫的访花频率较低, 可能是由较低的气温以及昆虫舌长与花蜜通道长度的不相匹配的关系所造成; 线叶龙胆花持续期较长, 而且柱头接受能力较强, 增加了授粉机会和胚珠受精机会, 同时, 传粉诱导的花闭合现象节约了植物对资源的利用, 适应了高山条件下花期较晚的植物的生长环境。
[1]
Anderson B, Midgley JJ, Stewart BA (2003). Facilitated selfing offers reproductive assurance: a mutualism between a hemipteran and carnivorous plant. American Journal of Botany, 90,1009-1015.

DOI PMID

[2]
Arroyo MTK, Armesto JJ, Primack RB (1985). Community studies in pollination ecology in the high temperate Andes of Central Chile Ⅱ. Effect of temperature on visitation rates and pollination possibilities. Plant Systematics and Evolution, 149,187-203.

[3]
Ashman TL, Schoen DJ (1994). How long should flowers lives? Nature, 371,788-791.

[4]
Becerra J, Lloyd DG (1992). Competition-dependent abscission of self-pollinated flowers of Phormium tenax (Agavaceae): a second action of self-incompatibility at the whole-flower level. Evolution, 46,458-469.

PMID

[5]
Bertin RI, Newman CW (1993). Dichogamy in angiosperms. The Botanical Review, 59,112-152.

[6]
Bhardwaj M, Eckert CG (2001). Functional analysis of synchronous dichogamy in flowering rush,Butomus umbellatus (Butomaceae). American Journal of Botany, 88,2204-2213.

PMID

[7]
Blionis GJ, Halley JM, Volou D (2001). Flowering phenology of Campanula on Mt. Olynipos, Greece. Ecography, 24,696-706.

[8]
Bingham RA, Orthner RA (1998). Efficient pollination of alpine plants. Nature, 391,238-239.

[9]
Dafni A (1992). Pollination Ecology: a Practical Approach. Oxford University Press, Oxford, UK, 1-57.

[10]
Duan YW, He YP, Liu JQ (2005). Reproductive ecology of the Qinghai-Tibet Plateau endemic Gentiana straminea (Gentianaceae), a hermaphrodite perennial characterized by herkogamy and dichogamy. Acta Oecologica, 27,225-232.

[11]
Duan YW, Zhang TF, Liu JQ (2007). Interannual fluctuations in floral longevity, pollinator visitation and pollination limitation of an alpine plant ( Gentiana straminea Maxim., Gentianaceae) at two altitudes in the Qinghai-Tibet Plateau. Plant Systematics and Evolution, 267,255-265.

[12]
Duan YW (段元文), Zhang TF (张挺峰), Liu JQ (刘建全) (2007). Pollination biology of Anisodus tanguticus (Solanaceae). Biodiversity Science (生物多样性), 15,584-591. ( in Chinese with English abstract).

[13]
Duan YW (段元文), Liu JQ (刘建全) (2003). Floral syndrome and insect pollination of the Qinghai-Tibet Plateau endemic Swertia przewalskii (Gentianaceae). Acta Phytotaxonomica Sinica (植物分类学报), 41,465-474. (in Chinese with English abstract)

[14]
Fabbro T, Körner C (2004). Altitudinal differences in flower traits and reproductive allocation. Flora, 199,70-81.

[15]
Fritz AL (1990). Deceit pollination of Orchis spitzelli (Orchidaceae) on the island of Gotland in the Baltic: a suboptimal system. Nordic Journal of Botany, 9,577-587.

[16]
Goodwillie C, Stiller JW (2001). Evidence for polyphyly in a species of Linantbus (Polemoniaceae): convergent evolution in self-fertilizing taxa. Systematic Botany, 26,273-282.

[17]
Grant V, Temeles EJ (1992). Foraging ability of rufous hummingbirds on hummingbird flowers and hawkmoth flowers. Ecology, 89,9400-9404.

[18]
He YP, Duan YW, Liu JQ, Smith WK (2006). Floral closure in response to temperature and pollination in Gentiana straminea Maxim. (Gentianaceae), an alpine perennial in the Qinghai-Tibetan Plateau. Plant Systematics and Evolution, 256,17-33.

[19]
He YP (何亚平), Fei SM (费世民), Liu JQ (刘建全), Chen XM (陈秀明), Wang P (王鹏), Jiang JM (蒋俊明), He F (何飞) (2005). A preliminary review of studies of alpine plant breeding system. Journal of Sichuan Forestry Science and Technology (四川林业科技), 26(4),43-49. ( in Chinese with English abstract).

[20]
He YP (何亚平), Liu JQ (刘建全) (2003). A review on recent advances in the studies of plant breeding system. Acta Phytoecologica Sinica (植物生态学报), 27,151-163. ( in Chinese with English abstract).

[21]
Herlihy CR, Eckert CG (2005). Evolution of self-fertilization at geographical range margins? A comparison of demographic, floral, and mating variables in central vs. peripheral populations of Aquilegia canadensis (Ranunculaceae). American Journal of Botany, 92,744-751.

DOI PMID

[22]
Ho TN, Liu SW (2001). A Worldwide Monograph of Gentiana. Science Press,Beijing.

[23]
Hodges SA (1995). The influence of nectar production on hawkmoth behavior, selfpollination and seed production in Mirabilis multiflora (Nyctaginaceae). American Journal of Botany, 82,197-229.

[24]
Hou QZ (侯勤正), Meng LH (孟丽华), Yang HL (杨慧玲) (2008). Pollination ecology of Gentiana siphonantha (Gentianaceae) and a further comparison with its sympatric congener species. Acta Phytotaxonomica Sinica (植物分类学报), 46,554-562. (in Chinese with English abstract)

[25]
Internicola AI, Juillet N, Smithson A, Gigord LDB (2006). Experimental investigation of the effect of spatial aggregation on reproductive success in a rewardless orchid. Oecologia, 150,435-441.

DOI PMID

[26]
Ishii HS, Sakai S (2002). Temporal variation in floral display size and individual floral sex allocation in racemes of Narthecium asiaticum (Liliaceae). American Journal of Botany, 89,441-446.

DOI PMID

[27]
Jones CE, Cruzan MB (1999). Floral morphological changes and reproductive success in deer weed (Lotus scoparius, Fabaceae). American Journal of Botany, 86,273-277.

PMID

[28]
Kudo G (1993). Relationship between flowering time and fruit set of the entomophilous alpine shrub,Rhododendron aureum (Ericaceae), inhabiting snow patches. American Journal of Botany, 80,1300-1304.

[29]
Lloyd DG (1965). Evolution of self-compatibility and racial differentiation in Leavenworthia (Cruciferae). Contri- bution from the Gray Herbarium of Harvard University, 195,3-134.

[30]
Lloyd DG, Webb CJ (1986). The avoidance of interference between the presentation of pollen and stigmas in angiosperms. I. Dichogamy. New Zealand Journal of Botany, 24,135-162.

[31]
Molau U (1993). Relationships between flowering phenology and life history strategies in Tundra plants. Arctic and Alpine Research, 55,391-402.

[32]
Molau U, Nordenhall U, Eriksen B (2005). Onset of flowering and climate variability in an alpine landscape: a 10-year study from Swedish Lapland. American Journal of Botany, 92,422-431.

DOI PMID

[33]
Petanidou T, Ellis-Adam AC, den Nijs HCM, Oostermeijer JGB (2001). Differential pollination success in the course of individual flower development and flowering time in Gentiana pneumonanthe L. (Gentianaceae). Botanical Journal of the Linnean Society, 135,25-33.

[34]
Plitmann U, Levin DA (1990). Breeding system in the Polemoniaceae. Plant Systematics and Evolution, 170,205-214.

[35]
Primack RB (1985). Longevity of individual flowers. Annual Review of Ecology and Systematics, 16,15-37.

[36]
Roberts LA, Parra-Tablla V, Navarro J (2007). Is floral longevity influenced by reproductive costs and pollination success in Cohniella ascendens (Orchidaceae)? Annals of Botany, 100,1367-1371.

DOI PMID

[37]
Schoen DJ, Ashman TL (1995). The evolution of floral longevity: resource allocation to maintenance vs. construction of repeated parts in modular organisms. Evolution, 49,131-139.

DOI PMID

[38]
Smithson A, Macnair MR (1997). Negative frequency-dependent selection by pollinators on artificial flowers without rewards. Evolution, 51,715-723.

DOI PMID

[39]
Spira TP, Pollak OD (1986). Comparative reproductive biology of alpine biennial and perennial gentianas ( Gentiana: Gentianaceae) in California. American Journal of Botany, 73,39-47.

DOI PMID

[40]
Webb CJ, Lloyd DG (1986). The avoidance of interference between the presentation of pollen and stigmas in angiosperms II. Herkogamy. New Zealand Journal of Botany, 24,163-178.

Outlines

/

〈 〉